RNA修饰是真核生物调控RNA功能与基因表达的重要方式。N4-乙酰胞苷(N4-acetylcytidine,ac4C)是目前已知唯一的mRNA乙酰化修饰,由N-乙酰转移酶10(N-acetyltransferase10,NAT10)催化形成。除mRNA外,NAT10还可参与rRNA、tRNA乙酰化及特定蛋白底物的乙酰化,因此厘清其体内作用方式十分关键。
NAT10在动植物发育与肿瘤发生中发挥重要作用,多种生物中其缺失可导致早期致死,但其调控生长发育的具体机制仍有待阐明。近日,复旦大学生命科学学院严冬团队在Science Advances在线发表题为“NAT10 governs development through the Xrp1-mediated stress response rather than its RNA acetylation activity”的研究论文。该研究以果蝇为模式生物,揭示了NAT10调控个体发育的新机制,发现NAT10缺失引起的发育异常主要依赖Xrp1介导的应激反应,而不依赖其RNA ac4C催化活性。
研究人员首先发现,敲低NAT10会导致果蝇眼部发生“眼睛向触角转化”的异常发育表型,同时伴随JNK信号激活和细胞凋亡。进一步研究表明,NAT10缺失还会引起核仁异常、核糖体生物发生受损以及整体蛋白合成下降,提示NAT10缺失可能造成明显的核糖体和蛋白稳态压力。
Xrp1是果蝇响应核糖体应激反应的核心转录因子。研究显示,NAT10敲低可显著引起Xrp1表达水平上调,进而激活整合应激反应(Integrated stress response,ISR)、蛋白毒性应激反应并诱导凋亡。遗传学实验进一步表明,敲低Xrp1能够显著挽救NAT10缺失导致的多种表型,包括细胞凋亡、ISR激活和眼睛的异常发育等。转录组分析也显示,NAT10缺失所引起的转录变化与核糖体蛋白缺失所引起的转录组变化具有相似性,而敲低Xrp1可以恢复大部分差异基因的变化。
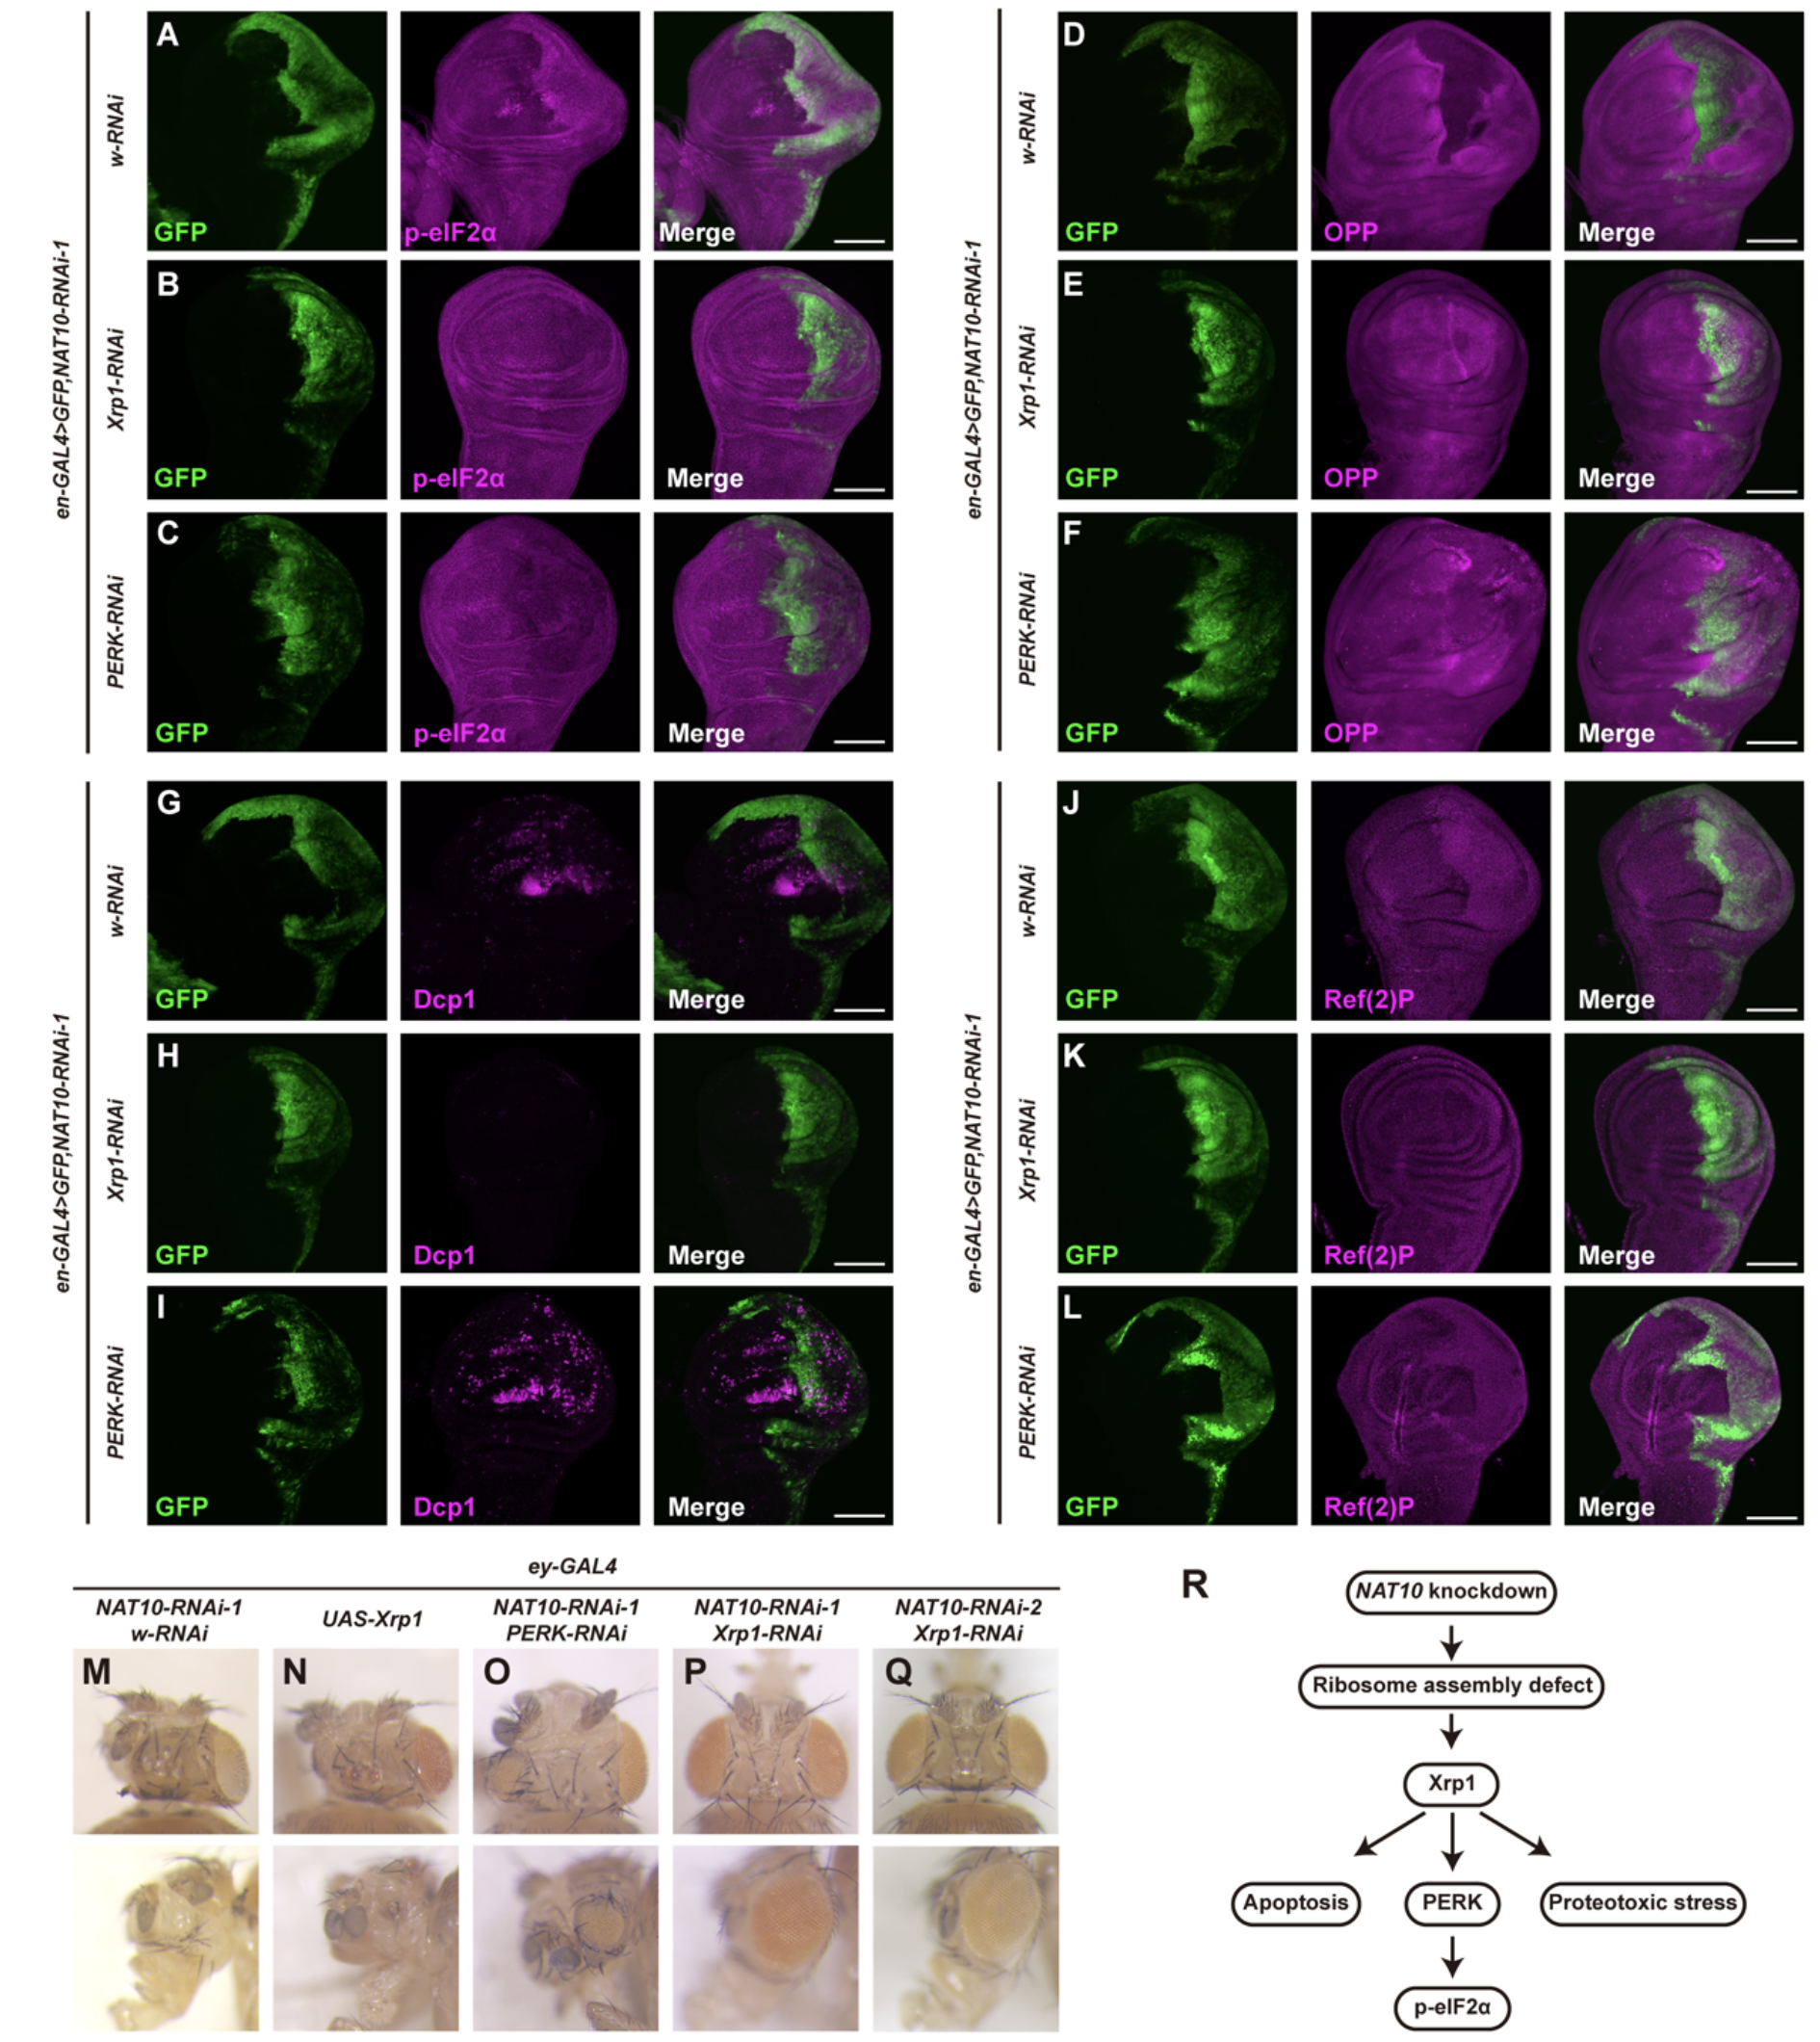
图1:Xrp1敲低挽救NAT10缺陷引起的细胞凋亡、ISR和眼部发育异常
值得注意的是,研究进一步揭示了上述发育表型与NAT10的RNA乙酰化功能并非直接相关。研究人员构建了催化活性受损的NAT10G613E突变体。尽管该突变体几乎不能恢复RNA,尤其是rRNA上的ac4C修饰,但NAT10G613E仍能够完全挽救NAT10突变导致的致死表型,并维持正常的核糖体组装和发育过程,同时不激活Xrp1介导的应激响应。
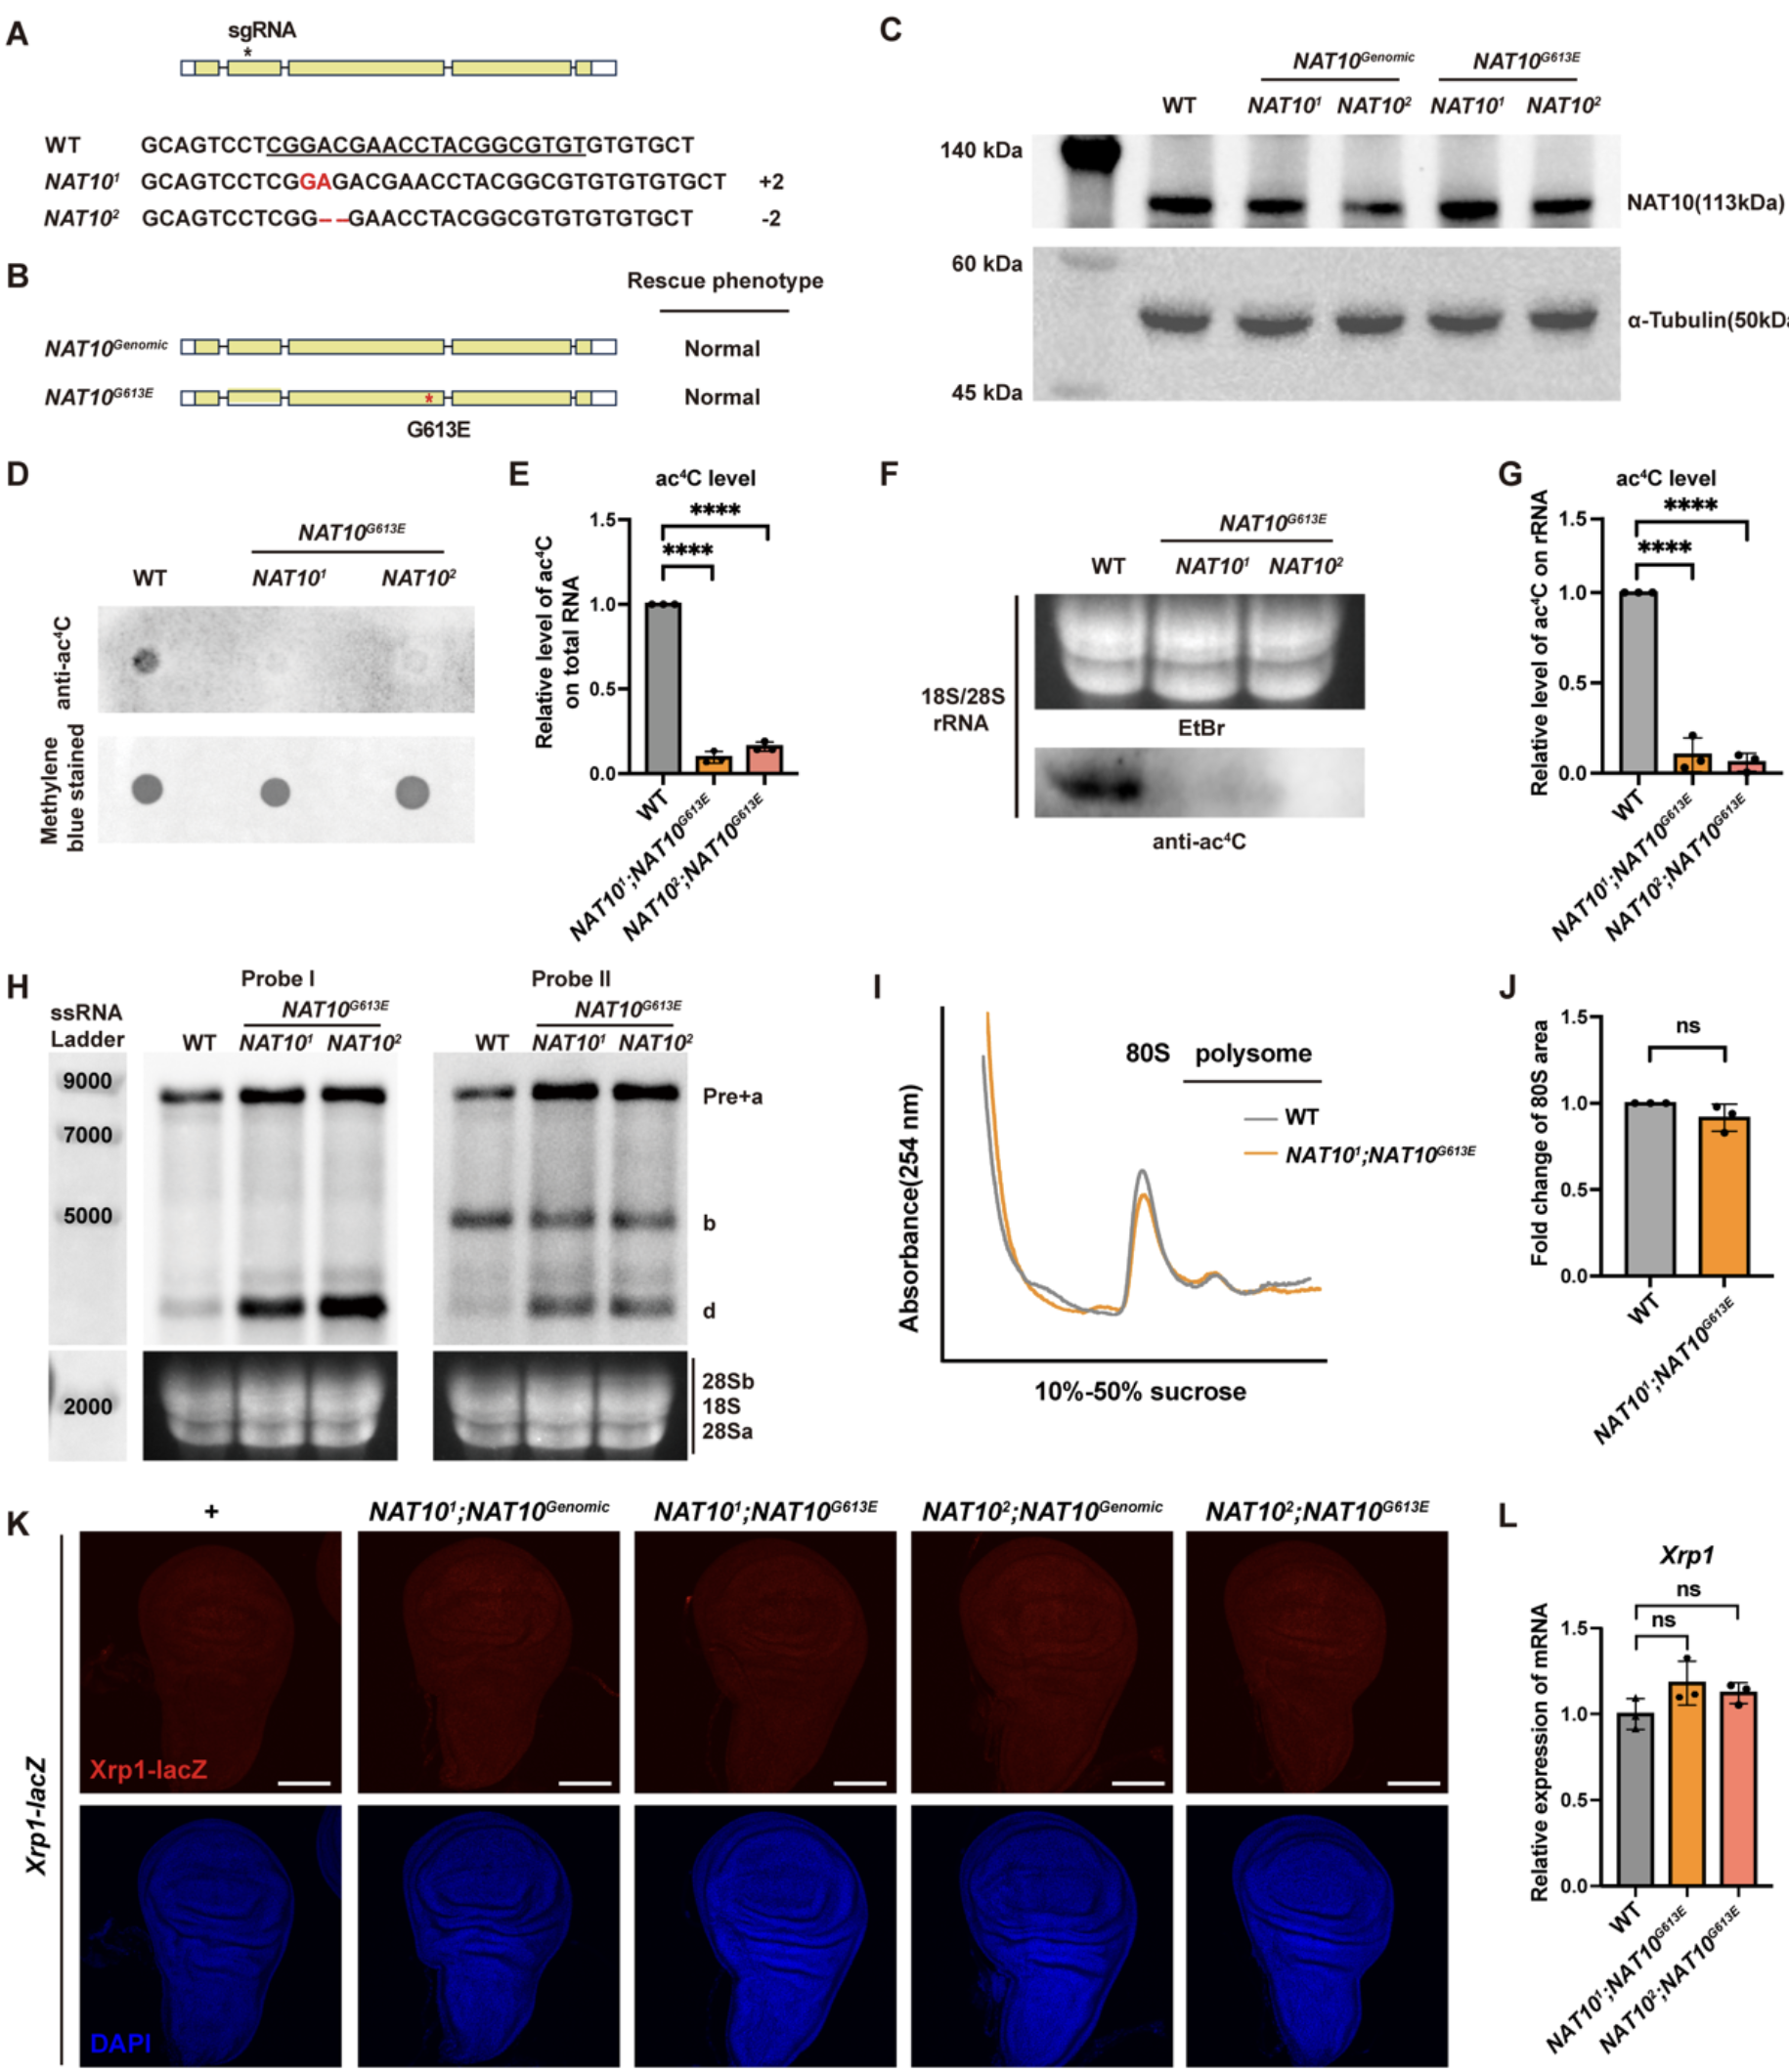
图2:NAT10缺失引起的发育异常不依赖其乙酰化修饰功能
综上,该研究表明NAT10在发育中的关键作用主要与其参与核糖体生成及维持细胞稳态有关,而并不依赖其RNA乙酰化催化活性。NAT10缺失通过核糖体应激反应,诱导Xrp1上调,并由此引发一系列应激响应和发育异常。因此,该研究不仅拓展了对NAT10功能多样性及其非催化作用机制的认识,也为深入解析NAT10相关疾病的产生提供了新的理论依据和研究视角。
复旦大学生命科学学院博士研究生王林、薛钊和高舒阳为论文共同第一作者,严冬研究员为通讯作者。林金钟教授、逯国亮青年研究员、和清华大学倪建泉教授参与了该研究并做出重要贡献。工作得到了国家自然科学基金、科技部国家重点研发计划、和复旦曹娥江基础研究基金的支持。
论文链接:https://www.science.org/doi/10.1126/sciadv.aeg0399